Intro[1]
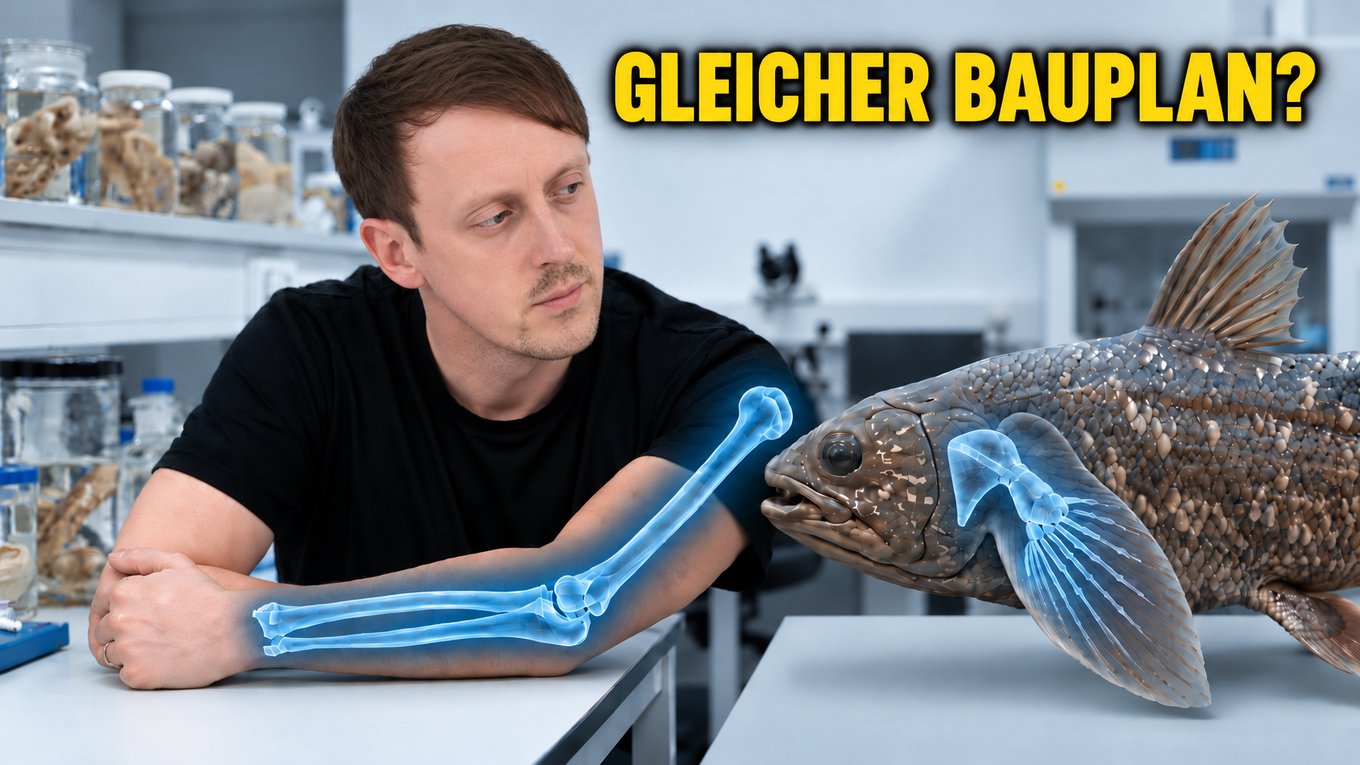
Deine Arme sind Flossen.
Das ist kein metaphorischer Vergleich. Keine poetische Übertreibung. Sondern ein anatomischer Fakt: Der Oberarmknochen, den du in deinem Körper spürst, existierte bereits vor über 400 Millionen Jahren – in den muskulösen, fleischigen Flossen eines Fisches.
Denn unsere Arme und Beine sind keine völlig neue Erfindung der Landwirbeltiere. Ihr grundlegender Bauplan entstand bereits im Wasser.
Um zu verstehen, wie das möglich ist, müssen wir uns zunächst die Fischgruppe ansehen, aus der die Landwirbeltiere hervorgingen: die Fleischflosser, Sarcopterygii.
Von dieser einst artenreichen Gruppe existieren heute nur noch zwei Quastenflosser-Arten und von den Lungenfischen sechs. Doch ihre Anatomie, Embryonalentwicklung und Genetik zeigen uns Merkmale eines Bauplans, aus dem später die Gliedmaßen der Tetrapoden hervorgingen.
Die Frage ist also zunächst nicht, wie ein Fisch schließlich an Land ging. Sondern: Was musste in einer Flosse bereits vorhanden sein, damit daraus überhaupt eine Gliedmaße werden konnte?
Fleischflosser
Quastenflosser[2]
Die Fleischflosser (Sarcopterygii) bestehen aus drei großen Abstammungslinien: den Actinistia, den Dipnoi und den Tetrapoda, also den Landwirbeltieren.
Ihr gemeinsames Merkmal sind die fleischigen, paarigen Flossen. Sie sind homolog zu unseren Armen und Beinen und besitzen dieselbe grundlegende Knochenabfolge. Aus einer frühen Linie der Fleischflosser gingen schließlich die ersten Landwirbeltiere hervor – ein Thema, dem wir uns in der nächsten Episode widmen. Hier konzentrieren wir uns auf die heute noch fischartig lebenden Verwandten der Tetrapoden.
Von den Actinistia existieren heute nur noch zwei Arten, die als Quastenflosser bekannt sind.
Lange glaubte man, diese Tiere seien bereits vor rund 70 Millionen Jahren ausgestorben. Umso größer war die Überraschung, als 1938 vor der Küste Südafrikas erstmals ein lebender Quastenflosser entdeckt wurde. Später fanden Forscher weitere Populationen im westlichen Indischen Ozean, unter anderem vor Südafrika, Madagaskar und den Komoren.
Quastenflosser leben in Tiefen zwischen etwa 100 und 500 Metern. Charakteristisch sind ihre vier kräftigen, fleischigen Flossen sowie ihre lang ausgezogene, dreilappige Schwanzflosse. Anhand der jährlichen Wachstumsringe ihrer Schuppen schätzt man ihre Lebenserwartung auf bis zu 100 Jahre. Geschlechtsreif werden sie vermutlich erst mit etwa 55 Jahren – eine außergewöhnlich späte Fortpflanzung unter Wirbeltieren.[3]
Quastenflosser werden häufig als „lebende Fossilien“ bezeichnet. Streng genommen ist dieser Begriff jedoch irreführend.
Er vermittelt den Eindruck, die Tiere hätten sich seit Millionen von Jahren weder anatomisch noch genetisch verändert. Tatsächlich bedeutet Evolution aber nicht zwangsläufig, dass sich die äußere Gestalt ständig stark verändern muss.
Die fossilen Quastenflosser, deren Überreste wir heute finden, gehören überwiegend zu völlig anderen Familien und Gattungen. Mehr als 70 fossile Arten sind bekannt. Sie unterschieden sich zum Teil erheblich von den heutigen Tiefseebewohnern. Manche lebten im Süßwasser, andere waren hochrückig wie Piranhas oder langgestreckt wie Aale.
Ein weiterer wichtiger Unterschied betrifft die Lunge.[4]
Frühe Quastenflosser besaßen funktionstüchtige Lungen. Da Weichteile normalerweise nicht fossil erhalten bleiben, erkennen Paläontologen sie an einer Besonderheit ihres Skeletts: Die Lunge war von einer festen Kapsel aus großen, dachziegelartig überlappenden Knochenplatten umgeben. Diese stabilisierte das Organ gegen Druckschwankungen beim Tauchen und fossilisierte hervorragend.
Neuere Untersuchungen zeigen außerdem, dass diese knöcherne Lungenkapsel über spezielle Knochenfortsätze mit dem Innenohr verbunden war. Die Lunge diente den frühen Quastenflossern vermutlich gleichzeitig als Resonanzkörper und verbesserte so das Hören unter Wasser.
Mit der Anpassung an das Leben in der Tiefsee verlor die Lunge jedoch ihre ursprüngliche Funktion.
Moderne Quastenflosser besitzen zwar embryologisch und anatomisch noch eine Lunge, sie ist jedoch stark verkümmert und funktionslos. Auch die einst massive Knochenkapsel ist nur noch in Form kleiner Knochenfragmente erhalten.
Der ehemalige Lungenraum wird stattdessen vollständig von einem Fettorgan ausgefüllt. Dieses wirkt ähnlich wie die ölreiche Leber der Haie und dient als hydrostatisches Organ, das den Auftrieb in der Tiefsee reguliert.
Dass ihre Vorfahren tatsächlich lungenatmend waren, zeigt die Embryonalentwicklung. Junge Quastenflosser bilden zunächst eine vergleichsweise große Lungenanlage aus. Erst während ihrer Entwicklung stoppt deren Wachstum, und das Organ wird nach und nach in das Fettorgan umgewandelt.
Auch genetisch sind Quastenflosser keineswegs evolutionär stehen geblieben.[5]
Genomvergleiche zeigen, dass sich ihr Erbgut durchaus dynamisch verändert hat. Eine Studie fand Hinweise darauf, dass beim afrikanischen Quastenflosser in den vergangenen rund zehn Millionen Jahren 62 neue CGGBP1-ähnliche Gene entstanden. Ihr Ursprung geht wahrscheinlich auf horizontal übertragene Transposons zurück – bewegliche DNA-Elemente, die ihre Position im Genom selbstständig verändern und sich vervielfältigen können.
Diese ursprünglich parasitären DNA-Sequenzen wurden im Laufe der Evolution vom Genom des Quastenflossers gewissermaßen übernommen und entwickelten sich zu funktionsfähigen Genen. Heute werden sie in verschiedenen Organen unterschiedlich stark aktiviert und spielen vermutlich eine wichtige Rolle bei der Regulation anderer Gene.
Auch Säugetiere und Vögel besitzen CGGBP1-Gene, die unter anderem an der Regulation der Genaktivität und am Schutz vor DNA-Schäden beteiligt sind. Welche Funktionen die entsprechenden Gene beim Quastenflosser im Detail erfüllen, wird derzeit noch erforscht.
Quastenflosser sind also keineswegs unveränderte Relikte aus der Urzeit. Zwar haben sich ihr grundlegender Körperbau mit den fleischigen Flossen und den Cosmoidschuppen über sehr lange Zeit bewährt, gleichzeitig zeigen der Verlust der funktionellen Lunge, die Umwandlung zum Fettorgan und Veränderungen ihres Genoms, dass auch sie sich kontinuierlich an neue Lebensräume angepasst haben. Evolution ist bei ihnen niemals zum Stillstand gekommen.
Lungenfische[6]
Die Dipnoi, also die Lungenfische, bilden die zweite heute noch lebende Linie der Fleischflosser.
Heute existieren nur noch sechs Arten, die auf drei Familien verteilt sind. Je eine Familie mit jeweils einer Art lebt in Südamerika und Australien, während die vier übrigen Arten zu den afrikanischen Lungenfischen gehören.
Der Fossilbericht der Lungenfische ist dagegen außerordentlich reichhaltig und reicht rund 410 Millionen Jahre zurück. Je weiter man in ältere Gesteinsschichten blickt, desto stärker ähneln diese frühen Lungenfische den Quastenflossern. Das verdeutlicht ihre gemeinsame Abstammung innerhalb der Fleischflosser.
Bekannt sind Lungenfische vor allem für ihre Fähigkeit, Luft zu atmen. Daneben besitzen sie die für Fleischflosser typischen gelappten Flossen sowie ein gut entwickeltes knöchernes Innenskelett.
Eine weitere außergewöhnliche Anpassung ist ihre Fähigkeit zur Sommerruhe. Trocknen ihre Gewässer aus, graben sich vor allem die afrikanischen Arten im Schlamm ein und umgeben sich mit einem Schleimkokon, der sie vor dem Austrocknen schützt. Gleichzeitig fahren sie ihren Stoffwechsel drastisch herunter und können so über lange Zeit ohne Wasser überleben, bis die Regenzeit zurückkehrt.
Alle heute lebenden Lungenfische besitzen einen langgestreckten Körper mit fleischigen Brust- und Bauchflossen sowie einer einzelnen Schwanzflosse.
Ihr Atmungssystem besteht aus stark gegliederten Lungen mit zahlreichen Luftkammern. Die meisten Arten besitzen zwei Lungen, lediglich der australische Lungenfisch verfügt nur über eine.
Zwischen den Arten gibt es jedoch einen entscheidenden Unterschied.
Nur der australische Lungenfisch kann seinen Sauerstoffbedarf als erwachsenes Tier allein über die Kiemen decken. Bei den übrigen fünf Arten sind die Kiemen so weit zurückgebildet, dass sie zum Überleben regelmäßig Luft atmen müssen.
Lungenfische können daher – genau wie wir – ertrinken, wenn sie keinen Zugang zur Luftoberfläche haben.
Gerade deshalb nehmen sie eine Schlüsselstellung in der Evolution ein. Die heute lebenden Lungenfische sind die nächsten noch existierenden Verwandten der Tetrapoden und geben uns einen einzigartigen Einblick in den Übergang vom Leben im Wasser zum Leben an Land.
Doch um zu verstehen, warum ausgerechnet die Fleischflosser die Eroberung des Landes vorbereiteten, müssen wir tiefer in die Anatomie eintauchen: zu den Flossen selbst. Denn in ihrem inneren Knochenskelett verbirgt sich der Bauplan, den wir heute in unseren eigenen Armen und Beinen wiederfinden.
Wir werden, basierend auf dem Fossilbericht und morphologischen Details in der nächsten Episode den Landgang der ersten Wirbeltiere verständlich machen. In dieser Episode wollen wir aber einigen grundsätzlicheren Fragen nachgehen und diese haben erstmal mit den Flossen bzw. Gliedmaßen an sich zu tun.
Flossen[7]
Kaum ein Merkmal prägt das Bild eines Fisches so sehr wie seine Flossen. Sie sind allerdings keine Besonderheit der Knochenfische: Bereits Knorpelfische und die ausgestorbenen Panzerfische besaßen verschiedene Flossentypen.
Dabei fällt ein bemerkenswertes Muster auf: Alle Fische besitzen höchstens vier bewegliche Flossen – vorne ein Paar Brustflossen und weiter hinten ein Paar Bauchflossen. Nie mehr. Fische mit sechs beweglichen Flossen gibt es nicht.
Warum ist das so?
Um diese Frage zu beantworten, müssen wir zum Ursprung der Chordaten zurückkehren. Die ersten Chordaten besaßen noch keine paarigen Flossen, sondern lediglich einen durchgehenden Flossensaum – so wie wir ihn bis heute bei den Lanzettfischchen finden. Genau dort beginnt die Evolution der Fischflossen.
Die Entstehung der Chordaten war eng mit der Optimierung der schlängelnden Fortbewegung verbunden. Eine entscheidende Rolle spielte dabei die Chorda dorsalis, ein elastischer Stützstab, der sich seitlich biegen konnte, ohne seine Länge zu verändern. Dadurch wurde der Körper stabilisiert und die Muskelkraft wesentlich effizienter in Vortrieb umgesetzt. Im Verlauf der Wirbeltierevolution wurde die Chorda später weitgehend durch die Wirbelsäule ersetzt.
An der Chorda setzen die segmentierten Muskelblöcke, die Myomere, an. Ihre abwechselnden Kontraktionen erzeugen die typische schlängelnde Schwimmbewegung. Zusätzliche Stabilität verlieh ein durchgehender Flossensaum, der sich entlang der Rücken- und Bauchseite des Körpers erstreckte. Dieser Flossensaum war jedoch noch nicht in einzelne Flossen gegliedert, und paarige Brust- oder Bauchflossen fehlten vollständig.
Die unpaaren Flossen – also Schwanz-, Rücken- und Afterflosse – entstanden vor über 500 Millionen Jahren aus diesem ursprünglichen Flossensaum. Im Laufe der Evolution wurde der Saum in einzelne Abschnitte unterteilt, aus denen sich durch die Ausbildung von Flossenstrahlen und Muskulatur eigenständige Flossen entwickelten. Je nach Lebensweise und Schwimmstil entstanden daraus die unterschiedlichsten Formen von Rücken- und Schwanzflossen.
Doch weshalb entwickelten sich zusätzlich genau zwei Paar bewegliche Flossen?
Aus konstruktionsmorphologischer Sicht ist das kein Zufall, sondern eine funktionelle Notwendigkeit. Ein Vergleich mit Flugzeugen oder U-Booten verdeutlicht das Prinzip: Zwei Paare horizontaler Steuerflächen reichen aus, um einen Körper während der Fortbewegung stabil auszurichten.
Ganz ähnlich funktioniert es bei Fischen. Da ihr Körper im Wasser nahezu schwerelos ist, übernehmen die paarigen Flossen vor allem Steuerungsaufgaben. Die Brustflossen kontrollieren die Lage des Vorderkörpers und ermöglichen präzise Richtungswechsel. Die Bauchflossen stabilisieren zusätzlich den Rumpf und verhindern, dass der Körper beim Beschleunigen oder Abbremsen nach oben oder unten ausbricht.
Zwei Flossenpaare genügen also, um den Körper effizient zu stabilisieren. Weitere bewegliche Flossen hätten kaum einen zusätzlichen funktionellen Vorteil geboten und standen deshalb nicht unter Selektionsdruck.
Die Evolution der paarigen Flossen hängt zudem eng mit der Entstehung der Kiefer zusammen. Erst bewegliche Kiefer ermöglichten es, größere und aktivere Beutetiere gezielt zu ergreifen. Dafür musste der Kopf unabhängig vom übrigen Körper präzise ausgerichtet werden. Ein Paar beweglicher Flossen direkt hinter dem Kopf erleichterte genau diese Steuerung, weil nicht mehr der gesamte Körper für jede Richtungsänderung gebogen werden musste.
Als Vorstufe der paarigen Flossen gelten seitliche Abschnitte des ursprünglich durchgehenden Flossensaums. Diese vergrößerten sich zunächst hinter dem Kopf und wurden durch Dermalknochen und Knorpel versteift. Im Laufe der Evolution entwickelten sich daraus eigenständige, bewegliche Flossen, die unabhängig von der Rumpfmuskulatur gesteuert werden konnten und die Manövrierfähigkeit erheblich verbesserten.
Auch die Embryonalentwicklung stützt dieses Modell. Brust- und Bauchflossen entstehen ausschließlich in zwei klar abgegrenzten Körperregionen, deren Position bereits durch die Ausdehnung des Dottersacks festgelegt wird. Deshalb entwickeln sich bei Fischen regelmäßig nur zwei Paar bewegliche Flossen. Und ein Blick auf die Gliedmaßen der Landwirbeltiere zeigt ein ähnliches Muster: auch hier gibt es nur maximal vier.
Der Grundbauplan der Tetrapodengliedmaßen[8]
Aus den paarigen Flossen der Fleischflosser entwickelten sich die Gliedmaßen der Tetrapoden. Trotz ihrer enormen Vielfalt – vom Flügel der Vögel über die Flosse des Wals bis zur Hand des Menschen – folgen sie alle demselben Grundbauplan: einem Knochen (Stylopodium), zwei Knochen (Zeugopodium) und vielen kleinen Knochen (Autopodium). Dieser Bauplan ist keine zufällige Anordnung, sondern ergibt sich aus den mechanischen Anforderungen eines tragfähigen Schreitbeins.
Das Stylopodium besteht stets aus nur einem Knochen – Oberarm- oder Oberschenkelknochen. Dieser verbindet die Gliedmaße über ein kräftiges, mehrdimensional bewegliches Gelenk mit Schulter- oder Beckengürtel. Die großen Muskeln des Rumpfes können hier direkt ansetzen und die Gliedmaße stabil führen. Zwei Knochen wären an dieser Stelle konstruktiv nachteilig, weil ihre Bewegungen an beiden Enden gleichzeitig kontrolliert werden müssten.
Das Zeugopodium besteht dagegen immer aus zwei parallelen Knochen – Elle und Speiche beziehungsweise Schien- und Wadenbein. Diese Konstruktion erlaubt es, Drehbewegungen innerhalb der Gliedmaße aufzunehmen, ohne dass sich die gesamte Standfläche auf dem Boden mitdrehen muss. Dadurch bleiben Fuß oder Hand stabil auf dem Untergrund, während sich der übrige Körper bewegt. Zwei Knochen verbinden somit Stabilität und Beweglichkeit wesentlich besser als ein einzelner Knochen.
Das Autopodium schließlich besteht aus zahlreichen kleinen Knochen der Hand- oder Fußwurzel sowie den Mittelhand- und Fingerknochen beziehungsweise ihren Entsprechungen im Fuß. Diese vielen Einzelknochen verteilen Druck- und Zugkräfte gleichmäßig, passen sich Unebenheiten des Untergrundes an und ermöglichen mit Fingern oder Zehen eine sichere Verankerung. Gleichzeitig verleihen sie der Gliedmaße die Feinbeweglichkeit, die für Greifen, Klettern oder Laufen erforderlich ist.
Die ersten Tetrapoden konnten diesen Bauplan nur entwickeln, weil ihre Vorfahren die paarigen Flossen bereits unter Wasser als Stütz- und Schreitorgane nutzten. Der Auftrieb erleichterte das Abstützen des Körpers und schuf die Voraussetzung dafür, dass sich die Flossen schrittweise zu tragfähigen Gliedmaßen entwickeln konnten. Erst auf dieser Grundlage wurde der Übergang an Land möglich.
Im Laufe der Evolution wurde dieser Grundbauplan vielfach spezialisiert. Bei Vögeln, Dinosauriern und vielen Säugetieren verschmolzen die beiden Knochen des Zeugopodiums teilweise, da ihre Gliedmaßen senkrecht unter dem Körper stehen und geringere Drehbewegungen ausführen. Andere Gruppen reduzierten ihre Gliedmaßen oder wandelten sie zu Flossen oder Flügeln um. Der grundlegende Bauplan blieb jedoch erhalten und gehört bis heute zu den auffälligsten Gemeinsamkeiten aller Tetrapoden.
Aber wie entsteht solch ein Grundbauplan überhaupt? Beachtet, dass alle Tiere aus einer befruchteten Eizelle, der Zygote, entstehen.
Embryonenbeine[9]
Hier schon mal eines vorweg: der Fossilbericht zeigt, dass die Stylo- Zeugo- und Autopodium genau in derselben Reihenfolge nacheinander gebildet haben. Das Stylopodium entspricht der Flossenbasis der Knochenfische. Das Zeugopodium findet sich bei den Fleischflossern und ein Autopodium mit funktionsfähigen Zehen und Fingern bei den Vorfahren der Tetrapoden. Dieses Muster findet sich auch in der Embryonalentwicklung wieder.
In einem frühen Stadium wird die Gliedmaße lediglich durch eine Extremitätenknospe repräsentiert, einen kleinen seitlichen Auswuchs aus der Körperwand. Die Spitze der Extremitätenknospe bildet die apikale ektodermale Randleiste, kurz AER, die als wichtiges Signalzentrum fungiert, um die ordnungsgemäße Entwicklung der Gliedmaßen sicherzustellen. Auf einer Seite der Gliedmaßenknospe befindet sich die Zone der polarisierenden Aktivität, kurz ZPA, der Signale enthält, die die Achse vom Daumen zum kleinen Finger bestimmen. Ein Schlüsselgen der ZPA, das an der Bestimmung dieser Achse beteiligt ist, ist Sonic hedgehog (Shh). Die Achse von der Schulter zur Fingerspitze wird durch AER-Signale wie Fgf8 und Wnt3a bestimmt, die Ober- und Unterseite einer Gliedmaße durch AER-Signale wie Wnt7a und En1.
Die Flossen und Gliedmaßen von Wirbeltieren entwickeln sich von der Schulter zur Fingerspitze, wobei sich unterschiedliche Entwicklungszonen unterscheiden lassen. Bei Fischflossen trennen diese Domänen die Knochensätze an der Flossenwurzel von den Flossenstrahlen. Bei Tetrapoden differenzieren sich nacheinander Stylo- Zeugo und Autopodium unter der Kontrolle von Shh und anderen Genen. Bei Fischen verlängert sich die AER zu einer apikalen Falte, aus der die Flossenstrahlen entstehen. Bei Tetrapoden wandelt sich die AER niemals in eine apikale Falte um. Die AER beleibt erhalten und statt der Flossenstrahlen entsteht das Autopodium. Dieser Wegfall der apikalen Falte und das Fortbestehen der AER sind entscheidend für die Umwandlung einer fischartigen Flosse in eine Tetrapoden-Gliedmaße.
Entscheidend für die Differenzierung der Gliedmaßenbereiche sind die Hox-Gene, die bei der Festlegung von Position und Ausrichtung des frühen Embryos, der Segmentierung sowie weiterer Aspekte der Körperarchitektur eine Rolle spielen. Diese Gene kommen bei Wirbeltieren in vier Clustern vor, wobei insbesondere die HoxA- und HoxD-Cluster die Gliedmaßenentwicklung steuern.
Laborversuche an Hühner- und Mäuseembryonen während dreier Entwicklungsphasen haben gezeigt, wie dies funktioniert.[10] In Phase I differenziert sich das Stylopodium in der Gliedmaßenknospe, was mit der Expression der Gene Hoxd9 und Hoxd10 einhergeht. In Phase II bildet sich das Zeugopodium am Ende der Gliedmaßenknospe, und die Gewebe werden von hinten nach vorne durch verschiedene verschachtelte Cluster aller Gliedmaßenknospen-Gene Hoxd9 bis Hoxd13 in fünf Zonen unterteilt. Hoxd9 wird in allen fünf Zonen exprimiert, Hoxd10 in den hinteren vier, bis hin zu Hoxd13, das nur in der hinteren der fünf Zonen vorkommt.
Schließlich wird in Phase III die Spitze der sich verlängernden Gliedmaßenknospe in drei Zonen unterteilt, die jeweils mit einer unterschiedlichen Kombination der Gene Hoxd10 bis Hoxd13 assoziiert sind. Hier findet eine Umwandlung der Hox-Gen-Expression statt, da Hoxd13 in allen Zonen vorhanden ist, während Hoxd10 bis Hoxd12 nur in der hinteren Zone zu finden sind.
Die Phasen I und II wurden bereits bei der Entwicklung von Teleostei, z. B. Zebrafischen, beobachtet, doch Phase III schien bis dahin eine Besonderheit der Tetrapoden zu sein, bis Experimente mit Zebrafischembryonen eine ähnliche Funktionsweise der HoxA- und HoxD-Cluster zeigten. Zumindest in gewisser Hinsicht sind die Flossenstrahlen der Fische hinsichtlich der Entwicklungssteuerung mit den Fingern der Tetrapoden gleichzusetzen.[11]
Damit sind auch die genetischen Voraussetzungen zur Bildung der Tetrapoden-Gliedmaßen erfüllt und finden sich schon im genetischen Werkzeugkasten der Fische.
Wenn wir an Landwirbeltiere denken, vergessen wir jedoch meist, dass es auch heute noch Fische gibt, die an Land leben können.
Laufende Fische
Eine Vielzahl von Fischen, die in Gezeitenzonen leben, verbringen viel Zeit außerhalb des Wassers, um an Land auf Beutesuche zu gehen. Im Südosten der USA ist der asiatische Froschwels (Clarias batrachus) ein legendärer Schädling, da er sich von einem Wasserbecken zum nächsten schlängeln kann, wobei er nur seine Strahlenflossen zum Vorankommen nutzt. Der Kletterfisch (Anabas testudineus)[12] aus Südostasien, wandert über Land auf der Suche nach Wasser, wenn seine Teiche austrocknen. Er bewegt sich mithilfe der stacheligen Ränder der Kiemendeckel fort und wird von den Flossen und dem Schwanz angetrieben. Er kann sogar auf niedrige Bäume klettern. Die am stärksten spezialisierten „Landfische“ sind die Schlammspringer (Familie Oxudercidae), die vollständig an das Leben an der Grenze zwischen Land und Wasser angepasst sind.[13] Sie haben sogar Augen, die wie Periskope funktionieren, sodass sie beim Schwimmen über Wasser schauen können. Schlammspringer durchstreifen die Wattflächen in Mangrovensümpfen und fangen ihre Beute im Schlamm. Sie nutzen ihre Fähigkeit, sich an Land zu schlängeln oder im Wasser zu schwimmen, um Raubtieren zu entkommen und können auch die freiliegenden Wurzeln der Mangrovenbäume hinaufklettern. Im Jahr 2014 veröffentlichten Wissenschaftler eine bemerkenswerte Studie. Sie nahmen Populationen des afrikanischen Flösselhechtes (Polypterus senegalus) und ließen sie immer wieder über trockenes Land laufen. Innerhalb von acht Monaten hatten die an Land aufgezogenen Flösselhechte ihre Strahlenflossen und die Muskeln zu ihrer Steuerung so verändert, dass sie effizienter laufen konnten; diejenigen, die in ihrem normalen Wasserlebensraum gehalten wurden, veränderten sich nicht.[14]
Keiner dieser Fische ist perfekt an das Landleben angepasst, aber sie sind so ausgestattet, dass sie gerade lange genug an Land leben können, um bestimmte Aufgaben zu erfüllen. Sie müssen in feuchten Klimazonen leben und in der Nähe von Wasser bleiben, damit sie nicht austrocknen, und sie kehren häufig ins Wasser zurück, um ihren Wasserhaushalt wiederherzustellen. Sie haben keine Lungen, sondern kommen mit ihren Kiemen, Schwimmblasen und der Feuchtigkeit in der Luft aus, um über längere Zeiträume ohne Lungen atmen zu können. Sie haben keine robusten, fleischigen Flossen, die zu Beinen und Füßen werden könnten, aber sie tun ihr Bestes mit den relativ schwachen Strahlenflossen, um sich auf dem Bauch voranzutreiben und über den Boden zu schlängeln. Tatsächlich gibt es eine Vielzahl von vollständig aquatischen Teleostei, wie die Fingerdrachenfische der Gattung Dactylopus[15] und die Grunzgroppen der Gattung Rhamphocottus[16], die ihre Strahlenflossen zu separaten „fingerartigen“ Merkmalen umgewandelt haben, die es ihnen ermöglichen, unter Wasser am Meeresboden entlang zu kriechen, wobei sie sich ähnlich wie ein Hummer bewegen. Diese „Flossenfinger“ sind jedoch nicht so robust, muskulös oder flexibel wie die Finger von Tetrapoden. Es handelt sich um provisorische Merkmale, die aus einer anderen Struktur (Strahlenflossen) entstanden sind und suboptimal zu „Halbfingern“ modifiziert wurden. Anglerfische der Gattung Antennarius nutzen ihre Flossen mit den fingerartigen Flossenstrahlen, um sich auf dem Meeresboden fortzubewegen, und zwar in einer Bewegung, die der von Tetrapoden sehr ähnlich, aber nicht identisch ist.[17] Es geht nicht darum, dass die Übergangsarten in der Evolution der Tetrapoden genauso aussahen, sondern es ist einfach der Beleg dafür, dass Organismen mit einer Morphologie, die ein gewisses Schwimmen und ein gewisses Verhalten an Land ermöglicht, ganz offensichtlich möglich sind, denn es gibt sie, und alle können sie sehen. Sie sind also nicht die Vorfahren der Landwirbeltiere, sondern zeigen, dass morphologische Zwischenstadien auch bei heute lebenden Organismen zu finden sind.
Aber: Studien zur Flossenbewegung von Quastenflossern und Lungenfischen haben gezeigt, dass sie ihre Flossen in einem „Schrittzyklus“ bewegen, der der Bewegung der vier Gliedmaßen von Tetrapoden ähnelt. Somit war die charakteristische Bewegungsabfolge der Beine von vierbeinigen Tieren bereits bei Fleischflossern vorhanden, die nie an Land gingen.[18]
Outro
Wir sind in dieser Episode den Fleischflossern auf den Grund gegangen — jener unscheinbaren Fischgruppe, deren paarige Flossen den Bauplan für sämtliche Tetrapodengliedmaßen enthalten.
Doch was wir bisher betrachtet haben, war gewissermaßen die Generalprobe. Fische, die kurze Ausflüge an Land unternehmen. Flossen, die einen Tetrapoden-Bauplan in sich tragen, aber noch keine echten Beine sind. Die entscheidende Frage bleibt: Wie sah der tatsächliche Vollzug aus?
In der nächsten Episode rekonstruieren wir den echten Landgang. Wir begegnen Eusthenopteron mit seinen kräftigen Flossen, Tiktaalik mit seinem beweglichen Hals und Acanthostega mit acht Zehen pro Gliedmaße. Nicht als lückenlose Ahnenreihe — sondern als anatomische Momentaufnahmen eines der tiefgreifendsten Umbauten der Wirbeltiergeschichte.
Denn wie wir in dieser Episode gelernt haben: Eure Arme sind Flossen. Aber wie aus Flossen Beine wurden — das ist eine Geschichte für sich.
[1] Eine Reihe an Literatur befasst sich mit der Evolution des Landgangs der Wirbeltiere. Folgende Lehrbücher bzw. Kapitel dienen als Orientierung, während in den folgenden Fußnoten nur noch auf Spezialliteratur zu einzelnen Fragestellungen verwiesen wird:
- Benton, M (2020). Vertebrate Paleontology. Wiley Blackwell, 6th edition, Kapitel 4 „First tetrapods“.
- Benton, M (2020; Hrsg). Cowens’s History of Life. Wiley Blackwell, 6th edition, Kapitel 8 „Leaving the water“
- Benton, M, Harper, D (2020): Introduction to Paleobiology and the Fossil Record. Wiley. Kapitel 16 „Fishes and basal tetrapods“.
- Clack, JA (2002). Gaining Ground: The Origin and Early Evolution of Tetrapods. Bloomington: Indiana University Press.
- Clack, JA (2009). The Fish–Tetrapod Transition: New Fossils and Interpretations. Evo Edu Outreach 2, 213–223. https://doi.org/10.1007/s12052-009-0119-2
- Hall, BK (2007, Hrsg): Fins into limbs. Evolution, Development, and Transformation. University of Chicago Press, besonders „Part I Evolution“
- Kardong, K (2009). Vertebrates Comparative Anatomy, Function, Evolution; fith edition. Kapitel 3 „The Vertrabte Story“.
- Laurin, M (2010). How Vertebrates Left the Water. University of California Press, Berkeley.
- Long, JA (2010). The Rise of Fishes (2nd ed.). Johns Hopkins University Press, Baltimore.
- Prothero, D (2013). Bringing Fossils to Life: An Introduction to Paleobiology. 3rd ed. New York: Columbia University Press, Kapitel 17: „Dry Bones. Vertebrates and their relatives“.
- Prothero, D (2017). Evolution – What the Fossils say and why it matters. Second edition. New York: Columbia University Press, Kapitel 10: „Fish out of water“
- Prothero, D (2021). The Evolving Earth. Oxford University Press, Kapitel 17: „Fishes and basal tetrapods“
- Prothero, D (2022). Vertebrate Evolution. CRC Press, Kapitel 4 “Primitive Gnathostomes”, Kapitel 6: „The transition to land. The Tetrapods“
- Shubin, N (2008). Your Inner Fish: A Journey into the 3.5 Billion History of the Human Body. Pantheon, New York.
- Oschmann, W (2018). Leben der Vorzeit. Kapitel 30: „Gnathostomata und Amphibien“
- Zimmer, C (1998). At the Water’s Edge: Macroevolution and the Transformation of Life. New York: Free Press
[2] Allgemeine Literatur zu den Quastenflossern, siehe:
- Cavin, L, Alvarez, N (2022). Why coelacanths are almost “living fossils”? Frontiers in Ecology and Evolution 10: 501. https://doi.org/10.3389/fevo.2014.00049
- Dutel, H et al. (2015). Bite force in the extant coelacanth Latimeria: the role of the intracranial joint and the basicranial muscle. Current Biology 25: 1228–1233. https://pubmed.ncbi.nlm.nih.gov/25891405/
- Ferrante, C, Cavin, L (2023). Early Mesozoic burst of morphological disparity in the slow‐evolving coelacanth fish lineage. Scientific Reports 13: 11356.
- https://www.nature.com/articles/s41598-023-37849-9
- Forey, PL (1998). History of the Coelacanth Fishes. Chapman & Hall, London.
- Weinberg, S (2011). A Fish Caught in Time: The Search for the Coelacanth, New edition. Harper Collins, New York.
[3] Mahé, K et al. (2021). New scale analyses reveal centenarian African coelacanths. Curr Biol 31(16):3621-3628.e4. https://pubmed.ncbi.nlm.nih.gov/34143958/
[4] Zur Lungenevolution der Quastenflosser, siehe:
- Brito, PM et al. (2010). The histological structure of the calcified lung of the fossil coelacanth Axelrodichthys araripensis (Actinistia: Mawsoniidae). Palaeontology 53:1281–1290, https://doi.org/10.1111/j.1475-4983.2010.01015.x.
- Cupello, C et al. (2015). Allometric growth in the extant coelacanth lung during ontogenetic development. Nat. Commun. 6: 8222. https://www.nature.com/articles/ncomms9222
- Cupello, C et al. (2017). The homology and function of the lung plates in extant and fossil coelacanths. Sci Rep 7, 9244 https://doi.org/10.1038/s41598-017-09327-6
- Cupello, C et al. (2024). Pulmonary arteries in coelacanths shed light on the vasculature evolution of air-breathing organs in vertebrates. Sci Rep 14(1):10624 https://www.nature.com/articles/s41598-024-61065-8
- Manuelli, L. et al. (2026). A dual respiratory and auditory function for the coelacanth lung. Commun Biol 9, 400. https://doi.org/10.1038/s42003-026-09708-6
[5] Zur Evolution der CGGBP1-Gene und weiterer Genom-Evolution bei Quastenflossern, siehe:
- Casane, D, Laurenti, P (2013). Why coelacanths are not ‚living fossils‘: a review of molecular and morphological data. Bioessays 35(4):332-8. https://doi.org/10.1002/bies.201200145
- Kumar P et al. (2025). CGGBP1 from higher amniotes restricts cytosine methylation and drives a GC-bias in transcription factor-binding sites at repressed promoters. Transcription. 16(4-5):285-320. https://pubmed.ncbi.nlm.nih.gov/40740140/
- Ummethum, H et al. (2025). The CGG triplet repeat binding protein 1 counteracts R-loop induced transcription-replication stress. EMBO Rep 26, 4 https://doi.org/10.1038/s44319-025-00550-1
- Yellan, I et al. (2021). Diverse Eukaryotic CGG-Binding Proteins Produced by Independent Domestications of hAT Transposons, Molecular Biology and Evolution 38(5):2070–2075 https://doi.org/10.1093/molbev/msab007
[6] Zu den Lungenfischen, siehe:
- Bemis, WE et al. (eds) (1986). The Biology and Evolution of Lungfishes. Alan R. Liss, New York.
- Cui, X et al. (2022). The rapid evolution of lungfish durophagy. Nature Communications 13: 2390. https://www.nature.com/articles/s41467-022-30091-3
- Jørgensen, JM, Joss, J (eds) (2011). The Biology of Lungfishes. Science Publishers, Enfield, NH.
- Kemp, A. (2023). Lungfish and the long defeat. Diversity 15: 63. https://doi.org/10.3390/d15010063
- Kemp, A et al. (2017). Evolutionary history of lungfishes with a new phylogeny of post‐Devonian genera. Palaeogeography, Palaeoclimatology, Palaeoecology 471: 209–219. https://www.sciencedirect.com/science/article/abs/pii/S0031018216304138?via%3Dihub
- Meyer, A et al. (2021). Giant lungfish genome elucidates the conquest of land by vertebrates. Nature, 590: 284–289. https://pubmed.ncbi.nlm.nih.gov/33461212/
[7] Konstruktionsmorphologische Arbeiten zur Entstehung der Flossen siehe:
- Gudo, M (2007). Die Evolution der Tiere. Querschnitte Materialien für Unterrichtsvorbereitung und Selbststudium. Frankfurt a. M.
- Gudo, M (2008). Die Evolution der schwimmenden Vierfüßer – Parallelentwicklungen für die Fortbewegung im Wasser. Querschnitte Materialien für Unterrichtsvorbereitung und Selbststudium. Frankfurt a. M.
- Gutmann, WF (1967). Das Dermalskelett der fossilen „Panzerfische“ funktionell und phylogenetisch interpretiert. Senckenbergiana leth. 48:277 – 283
- Gutmann, WF (1968). Die funktionelle Beziehung von Achsenskelett- und Stamm-Muskel-Apparat der fischartigen Vertebraten. Senckenbergiana biol. 49(3/4):265 – 272
- Gutmann, WF (1969). Die phylogenetische Entstehung von Chorda, Seitenplatten und Somiten. Senckenbergiana biol. 50(1/2):107 – 124, Frankfurt am Main
- Gutmann, WF (1969). Die Entstehung des Vertebraten-Kopfes, ein phylogenetisches Modell. Senckenbergiana biol. 50(5/6):433 – 471, Frankfurt am Main
- Gutmann, WF (1971). Die Verfestigung des Gefüges und die zunehmend direkte Kraftübertragung im Bewegungsapparat der Cranioten. Senckenbergiana biol. 52(1/2):151 – 169, Frankfurt am Main
- Gutmann, WF (1975). Das Schuppenhemd der niederen Wirbeltiere und seine mechanische Bedeutung. Natur und Museum 105(6):169 – 185
- Gutmann, WF (1977). Die Entstehung des Konstruktionsplans der Wirbeltiere. MNU 4, 207 – 215
- Gutmann, WF (1983). Die Entstehung des Dermalskelettes: Biomechanische Grundbedingungen des fossilen Schuppenpanzers. Senckenbergiana lethaea 64(2/4):179 – 197, Frankfurt am Main
- Herkner, B (1991). Neue Betrachtungen zur Chordatenevolution, Natur und Museum, 121(7):193 – 203, Frankfurt am Main
- Herkner, B (1993). Biomechanische Rekonstruktion der Flossenevolution. Natur und Museum 123(7):189 – 203, Frankfurt am Main
- Stephens, TD (1983). Parameters establishing the location and nature of the tetrapod limb. In: Fallon, JF, Caplan, AI (Hrsg.). Limb development and regeneration. Part A.: 3 – 12, Alan R. Liss, New York
[8] Konstruktionsmorphologische Arbeiten zu Tetrapodenbeinen (ergänzend zu den Fußnoten bei Kapitel zu den Flossen):
- Peters, DS (1985). Mechanical constraints canalizing the evolutionary transformation of tetrapod limbs. Acta Biotheor 34:157–164. https://doi.org/10.1007/BF00046781
- Peters, DS (1993). Konstruktionszwänge bei der Skelettentwicklung am Beispiel der Tetrapoden-Gliedmaßen. PdN-B. 8/42:38-42
- Peters, DS, Gutmann, WF (1978). Ausgangsform und Entwicklungszwänge der Gliedmaßen landlebiger Wirbeltiere. Natur u. Museum 108:16–21.
[9] Eine genauere Übersicht zur Embryonalentwicklung und Evo-Devo der Gliedmaßen, siehe meinen entsprechenden Artikel: https://internet-evoluzzer.de/wie-embryonen-die-evolution-der-gliedmassen-erklaeren-von-luca-bis-eva-15/
Eine Gesamtübersicht findet sich auch in:
- Amaral, DB, Schneider, I (2018). Fins into limbs: recent insights from sarcopterygian fish. Genesis 56: e23052. https://pubmed.ncbi.nlm.nih.gov/28834157/
- Baressi, MJF, Gilbert, SF (2020). Developmental Biology, Sinauer Associates. 12. Auflage. Kapitel 19 „Development of the Vertebrate Limb“ und Kapitel 25: „Development and Evolution“
- Carroll, SB et al. (2004). From DNA to diversity: molecular genetics and the evolution of animal design (2nd ed.). Malden, MA ; Wiley-Blackwell.
- Clack, JA (2009). The fin to limb transition: new data, interpretations, and hypotheses from paleontology and developmental biology. Annual Review of Earth and Planetary Sciences 37: 163–79. https://doi.org/10.1146/annurev.earth.36.031207.124146
- Coates, MI et al. (2008). Ever since Owen: changing perspectives on the early evolution of tetrapods. Annual Review of Ecology, Evolution, and Systematics39: 571–92. https://doi.org/10.1146/annurev.ecolsys.38.091206.095546
- Delaurier, A et al. (2008). The Mouse Limb Anatomy Atlas: an interactive 3D tool for studying embryonic limb patterning. BMC Dev. Biol. 8: 83–89. https://pubmed.ncbi.nlm.nih.gov/18793391/
- Hall, BK (2007). Fins into Limbs. The University of Chicago Press
- Hoff M (2014). A Footnote to the Evolution of Digits. PLoS Biology 12(1): e1001774. https://doi.org/10.1371/journal.pbio.1001774
- Saxena, A et al. (2017). The origins, scaling and loss of tetrapod digits. Philosophical Transactions of the Royal Society B 372:20150482. https://pmc.ncbi.nlm.nih.gov/articles/PMC5182414/
- Schneider, I, Shubin, NH (2013). The origin of the tetrapod limb: from expeditions to enhancers. Trends Genet 29(7):419-26. https://pubmed.ncbi.nlm.nih.gov/23434323/
- Shubin, NH et al. (1997). Fossils, genes and the evolution of animal limbs. Nature 388: 639–648. https://pubmed.ncbi.nlm.nih.gov/9262397/
- Wolpert, L. (2019): Principles of Development, Oxford University Press, 6. Auflage, Kapitel 10 „Organogenesis“ und Kapitel 14: „Evolution and Development“
- Woltering, JM et al. (2014). Conservation and divergence of regulatory strategies at Hox loci and the origin of tetrapod digits. PLoS One 12(1): e1001773. https://doi.org/10.1371/journal.pbio.1001773
- Yano, T, Tamura, K (2013). The making of differences between fins and limbs. Journal of Anatomy 222: 100–113. https://pmc.ncbi.nlm.nih.gov/articles/PMC3552418/
- Zeller, R et al. (2009). Vertebrate limb bud development: moving towards integrative analysis of organogenesis. Nat Rev Genet 10, 845–858. https://doi.org/10.1038/nrg2681
[10] Es empfielht sich die in meinem Text zur Embryonalentwicklung der Gliedmaßen die zitierten Quellen anzuschauen. Hervorzuheben ist aber folgende Literatur zur Rolle der Hox-Gene:
- Andrey, G et al. (2013). A switch between topological domains underlies HoxD genes collinearity in mouse limbs. Science 340:1234167 https://pubmed.ncbi.nlm.nih.gov/23744951/
- Davis, AP et al. (1995). Absence of radius and olna in mice lacking hoxa-11 and hoxd-11. Nature, 375, 791-795. https://pubmed.ncbi.nlm.nih.gov/7596412/
- Goodman, FR (2002). Limb malformations and the human HOX genes. Am. J. Med. Genet. 112:256–265. https://pubmed.ncbi.nlm.nih.gov/12357469/
- Kmita, M et al. (2005). Early developmental arrest of mammalian limbs lacking HoxA/HoxD gene function. Nature 435:1113–1116. https://www.nature.com/articles/nature03648
- Nelson, CE et al. (1996). Analysis of Hox gene expression in the chick limb bud. Development 122: 1449–1466. https://pubmed.ncbi.nlm.nih.gov/8625833/
- Tanaka, M (2017). Evolution of vertebrate limb development. eLS 1–10. https://doi.org/10.1002/9780470015902.a0002099.pub2
- Wellik, DM, Capecchi, MR (2003). Hox10 and Hox11 genes are required to globally pattern the mammalian skeleton. Science 301: 363–367. https://pubmed.ncbi.nlm.nih.gov/12869760/
Zur Rolle des Gens Shh besonders diese hier:
- Harfe, BD et al. (2004). Evidence for an expansion-based temporal Shh gradient in specifying vertebrate digit identities. Cell 118:517–528. https://pubmed.ncbi.nlm.nih.gov/15315763/
- Hill, RE, Lettice, LA (2013). Alterations to the remote control of Shh gene expression cause congenital abnormalities. Trans. R. Soc. B 368:20120357. https://pmc.ncbi.nlm.nih.gov/articles/PMC3682722/
- Lettice, LA et al. (2008). Point mutations in a distant Shh cis-regulator generate a variable regulatory output responsible for preaxial polydactyly. Hum. Mol. Genet. 17:978–985 https://doi.org/10.1093/hmg/ddm370
- Litingtung, Y et al. (2002). Shh and Gli3 are dispensable for limb skeleton formation but regulate digit number and identity. Nature 418:979–983. https://pubmed.ncbi.nlm.nih.gov/12198547/
- Niswander, L et al. (1994). A positive feedback loop coordinates growth and patterning in the vertebrate limb. Nature 371:609–612. https://pubmed.ncbi.nlm.nih.gov/7935794/
- Pizette, S, Niswander, L (1999). BMPs negatively regulate structure and function of the limb apical ectodermal ridge. Development 126: 883–894. https://pubmed.ncbi.nlm.nih.gov/9927590/
- Riddle, RD et al. (1993). Sonic hedgehog mediates polarizing activity of the ZPA. Cell 175: 1401–1416. https://pubmed.ncbi.nlm.nih.gov/8269518/
- Suzuki, T et al. (2004). Tbx genes specify posterior digit identity through Shh and BMP signaling. Dev. Cell 6:43–53. https://pubmed.ncbi.nlm.nih.gov/14723846/
- Suzuki, T et al. (2008). Unique SMAD1/5/8 activity at the phalanx-forming region determines digit identity. Proc. Natl. Acad. Sci. USA 105:4185–4190 https://doi.org/10.1073/pnas.0707899105
- te Welscher, P et al. (2002). Progression of vertebrate limb development through SHH-mediated counteraction of GLI3. Science 298:827–830. https://pubmed.ncbi.nlm.nih.gov/12215652/
- Tickle, C. (2006). Making digit patterns in the vertebrate limb. Nat. Rev. Mol. Cell Biol. 7:1–9. https://pubmed.ncbi.nlm.nih.gov/16493412/
- Tickle, C, Towers, M (2017). Sonic hedgehog signaling in limb development. Front. Cell Dev. Biol. 5:14. https://pubmed.ncbi.nlm.nih.gov/28293554/
- Towers, M et al. (2008). Integration of growth and specification in chick wing digit-patterning. Nature 452:882–886. https://pubmed.ncbi.nlm.nih.gov/18354396/
- Vokes, SA et al. (2008). A genome-scale analysis of the cis-regulatory circuitry underlying Shh mediated patterning of the mammalian limb. Genes Dev. 22:2651–2663 https://pubmed.ncbi.nlm.nih.gov/18832070/
- Yang, Y et al. (1997). Relationship between dose, distance and time in Sonic Hedgehog-mediated regulation of anteroposterior polarity in the chick limb. Development 124: 4393–4404. https://pubmed.ncbi.nlm.nih.gov/9334287/
- Zeller, R et al. (2009). Vertebrate limb bud development: moving towards integrative analysis of organogenesis. Nature Rev. Genet. 10: 845–858. https://pubmed.ncbi.nlm.nih.gov/19920852/
[11] Zu Untersuchungen mit Zebrafischen, siehe:
- Hawkins et al. (2021). Latent developmental potential to form limb-like skeletal structures in zebrafish. Cell 184(4): 899-911 https://www.cell.com/cell/fulltext/S0092-8674(21)00003-9
[12] Siehe:
- Ahmad, AB et al. (2019). Anabas testudineus. IUCN Red List of Threatened Species. e.T166543A174787197. https://www.iucnredlist.org/species/166543/174787197
- Hughes, GM, Singh, BN (1970). Respiration in an Air-Breathing Fish, the Climbing Perch Anabas Testudineus Bloch. Journal of Experimental Biology. 53(2):265–280. https://doi.org/10.1242/jeb.53.2.265
[13] Siehe:
- Harris VA (1960). On the locomotion of the mudskipper Periophthalmus koelreuteri (Pallas): Gobiidae. Proceedings of the Zoological Society of London. 134:107–135. https://doi.org/10.1111/j.1469-7998.1960.tb05921.x
- Kawano, SM, Blob, RW (2013). Propulsive Forces of Mudskipper Fins and Salamander Limbs during Terrestrial Locomotion: Implications for the Invasion of Land. Integrative and Comparative Biology. 53(2):283–294. https://doi.org/10.1093/icb/ict051
- Pace CM, Gibb AC (2009). Mudskipper pectoral fin kinematics in aquatic and terrestrial environments. The Journal of Experimental Biology. 212(14):2279–2286. https://doi.org/10.1242/jeb.029041
[14] Standen, E et al. (2014). Developmental plasticity and the origin of tetrapods. Nature 513:54–58. https://doi.org/10.1038/nature13708
[15] Harrington, ME (1997). Behavior patterns and sexual dimorphism in the spotted dragonet, Diplogrammus pauciradiatus (Pisces: Callionymidae). Bulletin of Marine Science. 60 (3): 872–893.
[16] Mecklenburg, CW (2003). Family Rhamphocottidae Gill 1888 — grunt sculpins. California Academy of Sciences Annotated Checklists of Fishes (4).
[17] Dianne JB (2012). Frogfishes , ANTENNARIIDAE, in Fishes of Australia http://www.fishesofaustralia.net.au/home/family/343
[18] Siehe:
- Aiello, BR et al. (2014). Functional subdivision of fin protractor and retractor muscles underlies pelvic fin walking in the African lungfish Protopterus annectens. J Exp Biol 217(19):3474–3482. https://doi.org/10.1242/jeb.105262
- Falkingham, P, Horner, A (2016). Trackways Produced by Lungfish During Terrestrial Locomotion. Sci Rep 6, 33734. https://doi.org/10.1038/srep33734
- King HM, Hale ME (2014). Musculoskeletal morphology of the pelvis and pelvic fins in the lungfish Protopterus annectens. J Morphol. 275(4):431-41. https://pubmed.ncbi.nlm.nih.gov/24741713/
- King HM et al. (2011). Behavioral evidence for the evolution of walking and bounding before terrestriality in sarcopterygian fishes. Proc Natl Acad Sci U S A. 108(52):21146-51. https://pubmed.ncbi.nlm.nih.gov/22160688/